

 图 1
兔抗嗜水气单胞菌IgG的SDS-PAGE结果
Figure 1.
SDS-PAGE of rabbit Ig G from A. hydrophila M: low molecular protein standards; 1: rabbit Ig G
引用本文:
林鹏, 卢洁, 郭松林, 冯建军, 王艺磊, 陈锦民. 时间分辨荧光免疫分析高灵敏检测嗜水气单胞菌[J]. 化学学报,
2017, 75(4): 398-402.
doi:
10.6023/A16110619

Citation: Lin Peng, Lu Jie, Guo Songlin, Feng Jianjun, Wang Yilei, Chen Jinmin. Sensitive Detection of Aeromonas Hydrophila by Time-Resolved Fluorimmunoassay[J]. Acta Chimica Sinica, 2017, 75(4): 398-402. doi: 10.6023/A16110619
Citation: Lin Peng, Lu Jie, Guo Songlin, Feng Jianjun, Wang Yilei, Chen Jinmin. Sensitive Detection of Aeromonas Hydrophila by Time-Resolved Fluorimmunoassay[J]. Acta Chimica Sinica, 2017, 75(4): 398-402. doi: 10.6023/A16110619
时间分辨荧光免疫分析高灵敏检测嗜水气单胞菌
摘要:
建立了生物素-链霉亲和素时间分辨荧光免疫分析(BAS-TRFIA)高灵敏检测嗜水气单胞菌的新方法.以兔抗IgG包被微孔板,加入嗜水气单胞菌菌株B18和生物素化IgG,生成的夹心复合物用Eu3+-链霉亲和素作为示踪物,Eu3+可与离解增强液形成时间分辨荧光(TRF),通过TRF值对病原菌定量.方法的检测限为1.0×10² cfu/mL,在1.0×10~1.0×106 cfu/mL范围内线性良好,相关系数0.9716.用该法检测时,不同来源的嗜水气单胞菌以及其它气单胞菌均呈阴性.板内和板间的变异系数分别小于5.00%和9.00%.所有相关检测试剂37℃恒温放置6 d后,检测性能无明显改变.对60份人工感染的美洲鳗鲡组织样品,包括肝、肾、肠、鳃和肌肉等组织进行检测,阳性检测率为98.33%.结果表明,BAS-TRFIA法检测嗜水气单胞菌,灵敏度高、特异性好、操作简便,该方法为水产养殖病原菌检测提供了新的思路.
-
关键词:
- 时间分辨荧光免疫分析
- / 嗜水气单胞菌
- / 生物素-亲和素系统
- / 美洲鳗鲡
- / 水产养殖
English
Sensitive Detection of Aeromonas Hydrophila by Time-Resolved Fluorimmunoassay
Abstract:
The aim of this study is to establish a biotin-avidin system and time-resolved fluorimmunoassay (BAS-TRFIA) for quantitative analysis of Aeromonas Hydrophila. First, A. Hydrophila strain B18 isolated from diseased Anguilla rostrata, was used for rabbit anti-serum preparation by injecting the formalin-inactivated bacteria. The rabbit immunoglobulin (IgG) was purified by SPA affinity column. Then, a 96-well microtiter plate precoated with the rabbit IgG was incubated with the strain B18, and biotinylated IgG was pipette to the wells to form a typical double-antibody-sandwich immune complex. Finally, Eu3+-labeled streptavidin was added the wells to produce affinity reaction. Time-resolved fluorescence (TRF) of Eu3+ was measured in enhancement solution to reflect the quantity of the strain B18. This assay showed a good relationship between TRF and the concentration of the strain B18. The limit of detection (LOD) was 1.0×10² cfu/mL, and the LOD of BAS-TRFIA was improved 400-fold compared to the already reported ELISA. The established sandwich BAS-TRFIA showed a good sixth order polynomial fitting from 1.0×10 to 1.0×10⁶ cfu/mL for the strain B18 with the correlation coefficient 0.9716. The strain B18 was positive in BAS-TRFIA, while 19 other contrast strains of Aeromonas eucrenophila, Aeromonas jandaei, Aeromonas enteropelogenes, Escherichia coli, Aeromonas bestiarum and Aeromonas media etc. were negative in the assay, indicating that the antibody had high specificity. The intra-assay and inter-assay standard deviation were less than 5.00% and 9.00%, respectively. The TRF didn't change obviously after the related reagents were placed at 37℃ for 6 days. The method was used to detect the tissues including liver, kidney, intestine, gill and muscle from A. rostrata infected artificial with the strain B18. The result showed 98.33% of 60 samples were positive. BAS-TRFIA for A. hydrophila strain B18 was sensitive, specific and simple. The results indicate that the established BAS-TRFIA has potential application for screening A. hydrophila in aquaculture.
-
1 引言
嗜水气单胞菌 (Aeromonas hydrophila) 属于弧菌科、气单胞菌属, 它不仅引发人类败血症、脑膜炎、腹泻等疾病[1], 而且还导致哺乳类等多种动物全身性败血症或局部感染[2].嗜水气单胞菌也是水产养殖业的重要病原菌之一, 爆发时会引起水产经济动物的大面积死亡[3, 4], 据报道, 鳗鲡败血病、红鳍病、烂鳃病均与嗜水气单胞菌感染有关[5], 建立灵敏、特异、快速的检测技术, 对嗜水气单胞菌进行监测, 不仅可减小病害造成的损失, 而且可对疾病的预防和控制起到积极的指导作用.
传统的细菌培养鉴定耗时长[6], 现已不能满足病害防治的需要.分子生物学手段如多重PCR检测嗜水气单胞菌[7], 方法灵敏, 但是检测之前需要提取病原菌核酸、设计和合成基因引物, 因此, 该方法的缺点是:样品前处理复杂.免疫检测技术具有方法简单、特异性强的优势, 更适于检测病原菌.其中, 荧光抗体法是以荧光物质为标记物, 陈昌福[8]曾用来检测中华鳖体内的嗜水气单胞菌, 但测量时的背景荧光波长与标记物相近, 干扰样品测定, 灵敏度不高.另外一种免疫检测法是酶联免疫吸附检测 (Enzyme linked immunosorbent assay, ELISA), 该法以酶为标记物, 胡大雁等[9]报道了嗜水气单胞菌的ELISA检测, 灵敏度可达4.0×10⁴ cfu/mL, 虽然灵敏度较荧光抗体法高, 但酶为生物大分子, 容易失活, 不易保存, 酶还会对免疫反应造成空间位阻效应, 同时ELISA法必须经过额外的显色步骤才能进行信号测定.时间分辨荧光免疫检测 (Time-resolved fluorimmunoassay, TRFIA) 以长寿命稀土螯合物作为标记物, 免疫反应后, 延缓测量时间, 短寿命的背景荧光完全衰变后再测量螯合物的荧光.与荧光抗体法相比, 可有效消除本底荧光干扰; 与ELISA相比, 稀土螯合物稳定、分子量小, 直接显色, TRFIA法的灵敏度显著高于以上两种免疫检测法, 该法已在化学[10]、医学[11]等领域得到广泛应用, 但在水产病原菌检测领域报道甚少.病原菌是一种颗粒性抗原, 而TRFIA主要是测定可溶性抗原[10], 在离解增强TRFIA系统中, 颗粒性抗原有可能使得解离效果发生改变, 我们曾经通过TRFIA分析产酸克雷伯氏菌 (Klebsiella oxytoca)[12], 严格控制解离及测定时间, 有效控制了颗粒性抗原对荧光测定的干扰, 灵敏度达5.0×10³ cfu/mL.生物素-链霉亲和素系统 (Biotin-Avidin System, BAS) 是70年代后期应用于免疫学的一种新型生物反应放大系统[13, 14], 本文首次采用BAS-TRFIA法检测嗜水气单胞菌菌株B18, 灵敏度达到1.0×10² cfu/mL, 远高于一般的病原菌TRFIA法检测[12].本实验所用菌株B18分离于爆发败血腹水病的美洲鳗鲡, 人工感染后确定为病原菌, 并经Biolog自动生化鉴定系统 (GeneⅢ) 鉴定为嗜水气单胞菌, 已保藏于中国典型培养物保藏中心, 保藏编号为CCTCC M 2015101.
2 结果与讨论
2.1 兔抗嗜水气单胞菌IgG的纯化及分析鉴定
免抗嗜水气单胞菌抗体IgG据文献[15]制备, 图 1为纯化的兔IgG溶液SDS-PAGE检测结果.由于SDS的变性作用, IgG降解为两条相同的重链 (50 kDa) 和两条相同的轻链 (25 kDa)[16].图中可知, 纯化的IgG溶液纯度高, 无其它杂蛋白.
图 1
兔抗嗜水气单胞菌IgG的SDS-PAGE结果
Figure 1.
SDS-PAGE of rabbit Ig G from A. hydrophila M: low molecular protein standards; 1: rabbit Ig G
2.10 抗体的效价与特异性
抗体效价越高, 与抗原亲和性越好, 其检测抗原的灵敏度就越高[18], 当提纯的兔抗IgG浓度为3.36 mg/mL时, 间接ELISA测得IgG溶液的效价高于1:25600, 说明提纯的兔抗嗜水气单胞菌IgG与抗原的亲和性良好, 适于生物素的标记.选取11株不同来源的嗜水气单胞菌、8株其它气单胞菌与菌株B18的抗体进行交叉反应的测定, 浓度均为1×10⁶ cfu/mL, P/N>2时判断为阳性, 表 2表明抗体与菌株B18有较强的阳性反应, 与其他日本鳗鲡病原菌菌株无交叉反应, 说明提纯的抗体特异性良好.高效价和高特异性是抗体用来进行BAS-TRFIA检测的基础.
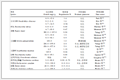 表 2
BSA-TRFIA法测定嗜水气单胞菌B18抗体的交叉反应
Table 2.
Cross reaction of A. hydrophila (B18) antibody using BSA-TRFIA
Species Lab code P/N values Resultsa 嗜水气单胞菌Aeromonas hydrophila B18 19.61 + 嗜水气单胞菌Aeromonas hydrophila B55 0.85 - 嗜水气单胞菌Aeromonas hydrophila B56 1.09 - 嗜水气单胞菌Aeromonas hydrophila B57 0.99 - 嗜水气单胞菌Aeromonas hydrophila B64 1.38 - 嗜水气单胞菌Aeromonas hydrophila B65 1.86 - 嗜水气单胞菌Aeromonas hydrophila B66 1.01 - 嗜水气单胞菌Aeromonas hydrophila B39 1.55 - 嗜水气单胞菌Aeromonas hydrophila B70 1.13 - 嗜水气单胞菌Aeromonas hydrophila B11 1.30 - 嗜水气单胞菌Aeromonas hydrophila B56-1 0.95 - 嗜水气单胞菌Aeromonas hydrophila B60-1 1.17 - 嗜泉气单胞菌Aeromonas eucrenophila B4224 1.73 - 简达气单胞菌Aeromonas jandaei B4228 1.35 - 肠棕色气单胞菌Aeromonas enteropelogenes B4255 1.21 - 大肠杆菌Escherichia coli B1003 1.30 - 兽生气单胞菌Aeromonas bestiarum B4227 1.21 - 中间气单胞菌Aeromonas media B4232 1.26 - 嗜水气单胞菌嗜水亚种Aeromonas hydrophila subsp. hydrophila B839 1.71 - 波波夫气单胞菌Aeromonas popoffii B4995 1.41 - a+, Represents positive result; -, Represents negative result. 表 2 BSA-TRFIA法测定嗜水气单胞菌B18抗体的交叉反应
Table 2. Cross reaction of A. hydrophila (B18) antibody using BSA-TRFIA2.11 标准曲线及灵敏度测定
通过BSA-TRFIA测定不同浓度的嗜水气单胞菌TRF值, 以lg TRF为纵坐标, 不同浓度细菌的对数值 (lg CFU) 为横坐标, 绘制标准曲线, 结果见图 3, 标准曲线在1.0×10~1.0×10⁶ cfu/mL范围内线性良好, 线性方程为lg TRF=0.3623 lg cfu+3.1825, R2=0.9716.方法的灵敏度依据文献[12]确定, 以P/N>2时所对应的最小浓度为检出限, 其灵敏度为1.0×10² cfu/mL, 灵敏度高于ELISA检测的400倍[9].我们前期用TRFIA法检测产酸克雷伯氏菌时, 其灵敏度可达到5.0×10³ cfu/mL, 现采用BSA-TRFIA检测嗜水气单胞菌, 灵敏度得到了极大提高.
 图 3
BSA-TRFIA检测嗜水气单胞菌B18的标准曲线
Figure 3.
Calibration curve of BSA-TRFIA for A. hydrophila B18
2.12 美洲鳗鲡样品的BAS-TRFIA检测
用建立的BAS-TRFIA法检测美洲鳗鲡样品, 结果见图 4, 在60份样品中只有一份肠样品呈阴性, 阳性检测率占98.33%.为验证该方法准确性, 同时对这60份样品进行了间接ELISA法检测, 由于ELISA法的灵敏度远低于BAS-TRFIA法, 部分样品检测不出嗜水气单胞菌, 只有42份样品呈阳性, 阳性检测率为70%.说明BAS-TRFIA可以更好地检测带菌的鳗鲡, 利于早期诊断.
 图 4
美洲鳗鲡样品的BSA-TRFIA检测结果
Figure 4.
Detective results of A.rostrata samples using BAS-TRFIA
2.2 生物素化IgG的标记比
标记比为每个IgG分子上标记的生物素分子个数, 根据生物素标记试剂盒 (21435) 说明书, 得出生物素化的IgG溶液中, 生物素为3.82×10⁻⁵ mmol, IgG为1.33×10⁻⁵ mmol, 故标记比约为2.87.
2.3 延迟时间的优化
Eu3+螯合物的荧光衰变时间约为700 ms, 而一般荧光免疫分析中荧光团的荧光衰变时间只有1~100 ms, 生物样品中蛋白质的背景荧光只有1~10 ms[17], 因此延迟测量时间, 待衰变时间短的干扰荧光完全衰变后测定, 所测信号即为完全的Eu3+螯合物荧光, 可以完全消除其它荧光的干扰.我们将延迟时间分别定为100、200、300、400、500 ms, 考察样品孔与对照孔的时间分辨荧光 (Time-resolved fluorescence, TRF) 比值, 结果见表 1, 延迟时间在200~400 ms时, TRF比值最大且基本不变, 延迟时间过短, 会导致其它荧光进入检测器干扰Eu3+螯合物荧光, 而延迟时间过长, Eu3+螯合物荧光本身也会衰变, 导致TRF减小.我们选择延迟时间400 ms进行测量.
表 1
延迟时间的优化
Table 1.
The optimization of delay time
Delay time/ms 100 200 300 400 500 Ratio of TRF 59.30 61.69 61.14 61.00 53.88 表 1 延迟时间的优化
Table 1. The optimization of delay time2.4 包被IgG的最适工作浓度
包被过程中, 若IgG浓度过大, 则会造成蛋白质分子的多层化, 影响载体对蛋白质的吸附, 一部分蛋白分子容易被洗掉; 若浓度过低, 则检测敏感性降低.固定嗜水气单胞菌浓度为1.0×10⁵ cfu/mL, 生物素化IgG以及Eu3+标记链霉亲和素均采用工作浓度.包被IgG用碳酸盐缓冲溶液分别从20 mg/mL梯度稀释至0.25 mg/mL, 在低浓度时, TRF值随包被IgG浓度增大而增大, 1.0 mg/mL时达最大, 其后略有减小, 故选择包被IgG的浓度为1.0 mg/mL.
2.5 生物素化IgG的最适工作浓度
生物素化IgG分别稀释成800、400、200、100、50 ng/mL, 包被IgG和Eu3+-链霉亲和素浓度为最适工作浓度, 菌浓度从1×10⁶至1×10² cfu/mL作一系列的10倍稀释, 每个稀释度2孔, 对照孔加入分析缓冲液, 比较不同生物素化IgG浓度下的工作曲线.结果见图 2, 浓度过低, 检测信号不灵敏, 且影响相关系数, 浓度过高, 增加非特异吸附, 且增大对照孔度数.从线性关系及灵敏度考虑, 我们取生物素化IgG浓度为100 ng/mL.
 图 2
生物素化IgG浓度对检测信号的影响
Figure 2.
Effect of concentration of biotinylated IgG on the signal
2.6 BAS的信号放大
我们在嗜水气单胞菌的TRFIA检测中引入了BAS[13, 14], 用生物素标记兔抗IgG, Eu3+标记链霉亲和素, 一个亲和素分子能结合4个生物素小分子, 二者的结合常数 (1×10¹⁵ mol/L) 远高于抗原抗体的结合常数, 生物素化IgG与待测的嗜水气单胞菌发生免疫反应后, 再采用Eu3+标记链霉亲和素与生物素结合, 可将标记信号级联放大, 结果有效提高了检测灵敏度, 也增强了免疫复合物的稳定性, 同时Eu3+标记链霉亲和素也可作为通用标记物, 检测不同抗原, 降低检测成本.
2.7 增强液离解时间的优化
嗜水气单胞菌是颗粒性的, 当加入Eu3+-链霉亲和素后, 形成的包被抗体-嗜水气单胞菌-生物素标记抗体-Eu3+-链霉亲和素复合物仍旧是颗粒性的, 在随后加入的离解增强液中的微环境与可溶性抗原不同, 离解效果会改变, 因而影响到荧光值.通过实验发现, 荧光值初始阶段不能保持稳定, 随着时间的延长而增大, 说明将稀土离子离解出来的效果不如可溶性抗原, 时间越长, 解离出来的稀土离子越多, 室温振荡10 min之后基本稳定, 与TRFIA测量产酸克雷伯氏菌的解离时间相似[12], 据此推测大部分稀土离子此时被解离出来.因此, 控制解离增强时间可有效消除颗粒性抗原的干扰, 本实验控制解离时间为10 min.
2.8 精密度测定
取2份不同浓度 (1×10⁴ cfu/mL和1×106 cfu/mL) 的嗜水气单胞菌样品, 每种浓度在同一块板上进行TRFIA检测, 根据TRF值计算板内相对标准偏差, 浓度为1×10⁴ cfu/mL的相对标准偏差为4.66%, 浓度为1×10⁶ cfu/mL的相对标准偏差为2.37%.在8块板上进行TRFIA检测, 根据TRF值计算板间相对标准偏差, 浓度为1×10⁴ cfu/mL的相对标准偏差为8.12%, 浓度为1×10⁶ cfu/mL的相对标准偏差为6.21%.说明该法精密度好, 可重复性高.
2.9 稳定性测定
检测相关试剂选择4 ℃放置6 d后和37 ℃放置6 d, 通过建立的BAS-TRFIA法进行嗜水气单胞菌的检测, 两种情况下各点的TRF值与原数据相比均相差不大, 变化不明显, 尤其是经37 ℃破坏性实验后稳定性仍旧良好, 可以耐受夏天高温的邮寄, 据此推测在4 ℃可以保存更长时间.
3 结论
建立了BAS-TRFIA检测嗜水气单胞菌的新方法, 通过控制解离时间消除颗粒性抗原对时间分辨荧光的影响, 该法不仅具有线性范围宽的优点, 检出限更是达到了1.0×10² cfu/mL, 远高于荧光抗体法 (由于用荧光显微镜观测无法定量)[8]及ELISA法 (4.0×10⁴ cfu/mL)[9].也高于TRFIA检测产酸克雷伯氏菌的检出限 (5.0×10³ cfu/mL).检测了60份人工感染的日本鳗鲡样品, 包括鳃、肾、肠、肝和肌肉组织, 结果满意. BAS-TRFIA检测致病菌具有良好的应用前景, 有望在水产养殖业得到推广应用.
4 实验部分
生物素标记兔抗IgG的制备:兔抗血清通过蛋白纯化系统 (AKTA Purifier, 100GE Healthcare) 纯化, 采用SPA亲和层析柱 (GE Healthcare), 层析液冻干得纯化的兔抗IgG, 采用生物素标记试剂盒 (21435, Thermo Scientific Pierce) 标记, 取2 mg IgG溶于1 mL 0.15 mol/L pH 7.2的PBS, 称取2.2 mg活化生物素 (Sulfo-NHS-LC-Biotin) 溶于400 mL超纯水中, 活化生物素分子量为557, 兔抗IgG分子量约为150000, 按照生物素与IgG物质的量比为20, 取生物素溶液26.9 mL加于兔抗IgG溶液中, 4 ℃反应2 h, 使得活化生物素与IgG结合; 用Zeba Desalt Spin Columns柱除去未结合的生物素, 以便纯化生物素标记的兔抗IgG.
标记比的计算:根据生物素标记试剂盒 (21435) 说明书, 采用HABA试剂测定生物素浓度. HABA试剂可与亲和素发生反应, 产物在500 nm处有最大吸光度, 加入生物素后, 吸光度减小, 减小的吸光度值与生物素成正比, 据此计算出生物素化IgG溶液中生物素的物质的量, 而IgG的物质的量可根据所称的IgG质量求得, 据此可求出生物素对IgG的标记比.
嗜水气单胞菌的BAS-TRFIA检测: pH 9.6, 0.05 mol/L的碳酸盐包被液稀释纯化后的兔抗IgG, 加入到96孔微孔板中, 每孔100 mL, 4 ℃包被12 h; 洗涤液洗涤3次, 每次3 min; 每孔加入200 mL 1% BSA, 37 ℃封闭2 h; 洗涤3次; 每孔加入分析缓冲液稀释的B18菌悬液100 mL, 37 ℃振荡孵育1 h; 洗涤3次; 每孔加入工作浓度的生物素标记兔抗IgG溶液100 mL, 37 ℃振荡孵育1 h; 洗涤3次; 加入工作浓度的Eu3+-链霉亲和素 (1244-360, Perkin-Elmer) 溶液100 mL, 37 ℃振荡孵育1 h, 每次3 min; 洗涤6次; 每孔加入200 mL增强液, 室温振荡10 min; 多标记分析仪 (VICTOR X4, Perkin-Elmer) 上测量时间分辨荧光TRF, 测量参数设置如下:激发波长340 nm, 发射波长615 nm, 延迟时间0.4 ms, 测量时间0.4 ms.以分析缓冲液代替B18菌悬液同时进行对照孔的检测.
美洲鳗鲡样品的实际检测:将B18活菌用无菌的0.85%生理盐水稀释为5×10⁸ cfu/mL, 腹腔注射至美洲鳗鲡活体, 每尾0.1 mL, 对照组注射生理盐水, 观察人工感染后的鱼体变化. 7 d后选用无明显症状的日本鳗鲡, 取鳃、肾、肠、肝、肌肉等部位组织0.05 g, 分别溶于700 mL无菌的0.85%生理盐水, 匀浆、离心, 上清液备检, 以同样处理的对照组鳗鲡组织样品为阴性对照, 利用建立的BAS-TRFIA法检测人工感染后12条鳗鲡组织样品.
-
-
[1]
Meng, S.; Wang, Y.; Wang, Y.; Liu, D.; Ye, C. Lett. Appl. Microbiol. 2015, 61(2), 171.
-
[2]
Chalifoux, L. V.; Hajema, E. M.; Leeparritz, D. Lab. Anim. Sci. 1993, 43(4), 355.
-
[3]
Fu, X. Z.; Lin, Q.; Liu, L. H.; Liang, H. R.; Huang, Z. B.; Li, N. Q. Fish Shellfish Immun. 2016, 56, 286. doi: 10.1016/j.fsi.2016.07.023
-
[4]
Griffin, M. J.; Goodwin, A. E.; Merry, G. E.; Liles, M. R.; Wil-liams, M. A.; Ware, C.; Waldbieser, G. C. J. Vet. Diagn. Invest. 2013, 25(4), 473. doi: 10.1177/1040638713494210
-
[5]
郭松林, 关瑞章, 华中农业大学学报, 2009, 28(4), 463.Guo, S.-L.; Guan, R.-Z. Journal of Huazhong Agriculture University 2009, 28(4), 463(in Chinese).
-
[6]
Chauret, C.; Volk, C.; Creason, R.; Jarosh, J.; Robinson, J.; Warnes, C. Can. J. Microbiol. 2001, 47(8), 782.
-
[7]
Hussain, I. A.; Jeyasekaran, G.; Shakila, R. J.; Raj, K. T.; Jeevithan, E. J. Food Sci. Tech. Mys. 2014, 51(2), 401. doi: 10.1007/s13197-013-1190-9
-
[8]
陈昌福, 华中农业大学学报, 1998, 17(3), 264.Chen, C.-F. J. Huazhong Agriculture University 1998, 17(3), 264(in Chinese).
-
[9]
胡大雁, 钱冬, 刘问, 张友平, 潘清清, 陈昌福, 华中农业大学学报, 2008, 27(1), 80.Hu, D.-Y.; Qian, D.; Liu, W.; Zhang, Y.-P.; Pan, Q.-Q.; Chen, C.-F. Journal of Huazhong Agriculture University 2008, 27(1), 80(in Chinese).
-
[10]
Jiang, H. F.; Wang, G. L.; Zhang, W. Z.; Liu, X. Y.; Ye, Z. Q.; Jin, D. Y.; Yuan, J. L.; Liu, Z. G. J. Fluoresc. 2010, 20(1), 321. doi: 10.1007/s10895-009-0559-7
-
[11]
Kupstat, A.; Kumke, M. U.; Hildebrandt, N. Analyst 2011, 136(5), 1029. doi: 10.1039/C0AN00684J
-
[12]
卢洁, 郭松林, 冯建军, 王艺磊, 朱洪泉, 林鹏, 分析化学, 2012, 40(11), 1709.Lu, J.; Guo, S.-L.; Feng, J.-J.; Wang, Y.-L.; Zhu, H.-Q.; Lin, P. Chinese J. Anal. Chem. 2012, 40(11), 1709(in Chinese).
-
[13]
Huang, Y. H.; Xu, Y.; He, Q. H.; Chu, J. S.; Du, B. B.; Liu, J. Food Agr. Immunol. 2014, 25(2), 186. doi: 10.1080/09540105.2012.759540
-
[14]
Tang, J.; Huang, Y. P.; Liu, H. Q.; Zhang, C. C.; Tang, D. P. Biosens. Bioelectron. 2016, 79, 508. doi: 10.1016/j.bios.2015.12.097
-
[15]
朱立平, 陈学清, 免疫学常用实验方法, 人民军医出版社, 北京, 2000, pp. 18~22.Zhu, L.-P.; Chen, X.-Q. Experimental Methods Used in Immunology, People's Military Medical Press, Beijing, 2000, pp. 18~22(in Chinese).
-
[16]
郑武飞, 医学免疫学, 人民卫生出版社, 北京, 1989, p. 38.Zheng, W.-F. Medical Immunology, People's Medical Publishing House, Beijing, 1989, p. 38(in Chinese).
-
[17]
沈健, 林德球, 徐杰, 生命科学, 2004, 16(1), 55.Shen, J.; Lin, D.-Q.; Xu, J. Chinese Bulletin of Life Science 2004, 16(1), 55(in Chinese).
-
[18]
李伟汉, 何小维, 齐维, 陈富裕, 现代食品科技, 2011, 27(12), 1480.Li, W.-H.; He, X.-W.; Qi, W.; Chen, F.-Y. Modern Food Science & Technology 2011, 27(12), 1480(in Chinese).
-
[1]
-

图 1 兔抗嗜水气单胞菌IgG的SDS-PAGE结果
Figure 1 SDS-PAGE of rabbit Ig G from A. hydrophila M: low molecular protein standards; 1: rabbit Ig G

图 2 生物素化IgG浓度对检测信号的影响
Figure 2 Effect of concentration of biotinylated IgG on the signal

图 3 BSA-TRFIA检测嗜水气单胞菌B18的标准曲线
Figure 3 Calibration curve of BSA-TRFIA for A. hydrophila B18

图 4 美洲鳗鲡样品的BSA-TRFIA检测结果
Figure 4 Detective results of A.rostrata samples using BAS-TRFIA
1~12代表 12条感染后的鳗鲡, B (肝)、C (肾)、D (肠)、E (鳃)、F (肌)
Number 1~12 represent the twelve infected A. rostrata, B (liver), C (kidney), D (intestine), E (gill), F (muscle)
表 1 延迟时间的优化
Table 1. The optimization of delay time
Delay time/ms 100 200 300 400 500 Ratio of TRF 59.30 61.69 61.14 61.00 53.88  下载: 导出CSV
表 2 BSA-TRFIA法测定嗜水气单胞菌B18抗体的交叉反应
Table 2. Cross reaction of A. hydrophila (B18) antibody using BSA-TRFIA
Species Lab code P/N values Resultsa 嗜水气单胞菌Aeromonas hydrophila B18 19.61 + 嗜水气单胞菌Aeromonas hydrophila B55 0.85 - 嗜水气单胞菌Aeromonas hydrophila B56 1.09 - 嗜水气单胞菌Aeromonas hydrophila B57 0.99 - 嗜水气单胞菌Aeromonas hydrophila B64 1.38 - 嗜水气单胞菌Aeromonas hydrophila B65 1.86 - 嗜水气单胞菌Aeromonas hydrophila B66 1.01 - 嗜水气单胞菌Aeromonas hydrophila B39 1.55 - 嗜水气单胞菌Aeromonas hydrophila B70 1.13 - 嗜水气单胞菌Aeromonas hydrophila B11 1.30 - 嗜水气单胞菌Aeromonas hydrophila B56-1 0.95 - 嗜水气单胞菌Aeromonas hydrophila B60-1 1.17 - 嗜泉气单胞菌Aeromonas eucrenophila B4224 1.73 - 简达气单胞菌Aeromonas jandaei B4228 1.35 - 肠棕色气单胞菌Aeromonas enteropelogenes B4255 1.21 - 大肠杆菌Escherichia coli B1003 1.30 - 兽生气单胞菌Aeromonas bestiarum B4227 1.21 - 中间气单胞菌Aeromonas media B4232 1.26 - 嗜水气单胞菌嗜水亚种Aeromonas hydrophila subsp. hydrophila B839 1.71 - 波波夫气单胞菌Aeromonas popoffii B4995 1.41 - a+, Represents positive result; -, Represents negative result.
下载: 导出CSV
-


 扫一扫看文章
计量
- PDF下载量: 10
- 文章访问数: 2459
- HTML全文浏览量: 162
 下载:

